

基因药(mRNA 疫苗、CRISPR 疗法)这几年最尴尬的事,莫过于"药有效,送不进去"。递送环节常年被两伙人垄断:病毒载体(AAV、慢病毒)能进细胞但包装容量小、有免疫原性、生产还贵;脂质纳米颗粒 LNP(mRNA 疫苗用的那套)倒是能装,但到了体内大多被肝脏截胡,往肌肉、肺、脑子里送就抓瞎。
Helmholtz Munich 和慕尼黑工大这次干了件挺"叛逆"的事:不模仿病毒了,直接用生成式 AI 从零设计蛋白质组装体,造了 100 多种"RNA 快递车",其中最好的一辆(STV-C8)递送效率比临床在用的 LNP 高上千倍,还顺带在猪身上完成了杜氏肌营养不良(DMD)的基因编辑。论文发在 Nature,题目就叫《用合成蛋白组装体从零构建 RNA 转运载体》。
[论文信息] 本期解读论文
标题:Creating bottom-up RNA transfer vehicles from synthetic protein assemblies
作者:Maren K. Schuhmacher 等(Helmholtz Munich / 慕尼黑工业大学 / Sanger 研究所等)
期刊:Nature,2026-09-02
链接:nature.com/articles/s41586-026-10952-3(公开摘要解读,全文付费)
01 病毒的"衣壳"不是最优解,只是进化碰巧走到的解
病毒是几十亿年进化出来的基因递送专家,但有趣的是,五花八门的病毒最后几乎都收敛到同一种造型:由成千上万个蛋白亚基拼成的大笼子(衣壳),多半是正二十面体或螺旋对称——因为衣壳要在野外恶劣环境里保护基因组,必须皮实。可作者点破一个盲区:当病毒被请进实验室当载体时,它面对的是培养皿,不是风雨雷电——进化为野外选的那些"皮实"特征,很多是冗余甚至负担。
生成式蛋白设计(RFdiffusion 这类工具)的价值正在这里:它能生成自然界不存在、但物理上完全可行的蛋白结构。团队的想法是,绕过进化走过的路,用 AI 生成的"非天然对称组装体"当车架,再给它装上三个病毒学里现成的功能模块——膜结合域(负责贴到细胞膜上)、出芽域(负责从生产细胞"拱"出去)、RNA 结合域(负责把货物 RNA 打包上车)。这些车被命名为 STV(synthetic transfer vehicles)。
▲ Fig. 1 a 病毒衣壳与 AI 设计组装体的尺寸/对称性对比(I/D/C 三种对称);b STV 架构:AI 组装域 + 出芽域 + 膜结合域 + RNA 结合域;f–h 39 种设计的释放/摄取/递送三联筛选结果
02 一条"释放-摄取-递送"的流水线,筛出黑马 STV-C8
造车容易,挑车难。团队搭了一条三联读数的筛选流水线:车从生产细胞释放多少(HiBiT 发光标记)、目标细胞摄取多少(LgBiT-HiBiT 互补发光)、货物 RNA 是否真的在目标细胞里表达了(拆分荧光素酶重建)——一套流程同时测释放、进胞、表达三个环节,先在 96 孔板上过一遍,再流式细验。
第一轮筛了 39 个 AI 设计组装域(覆盖正二十面体、二面体、环状三种对称),结果让进化论爱好者皱眉:非天然的环状(C 对称)和二面体(D 对称)设计,表现普遍碾压病毒同款的正二十面体。表现最好的 HE0690 是罕见的 C8 对称(8 个亚基围成一圈)。团队接着用 RFdiffusion 又生成 30 个 C8 变体,再用 FoldSeek 结构搜索挑了 29 个不同物种的膜结合域做排列组合——包括一个来自美洲黑熊(Ursus americanus)、此前从未被表征过的 PH 域(UaPHPLC),它成了最终版本的关键拼图。这辆集齐 UaPHPLC + 合成出芽域 SynL + PP7 噬菌体衣壳蛋白 tdPCP + HE0690 组装域的车,就是 STV-C8。
03 硬核数据:比病毒样颗粒强,比临床 LNP 高千倍
光看结构新奇没用,得跟现役选手同场竞技。三轮 benchmark 值得记住:
✦ 对遗传编码载体(VLP / EPN24 / SEND):四个物种来源的细胞系全线碾压,EGF mRNA 递送表达最高,且表面会携带 ESCRT 相关蛋白、出芽效率比 VSV-G 单独诱导高 50 倍。
✦ 对临床 LNP(辉瑞疫苗同款脂质 ALC-0315 配方):达到相同转染率所需 mRNA 剂量低超过 1 万倍;细胞转染率对比高 1000 倍以上。
✦ 免疫原性:LNP 装未修饰 mRNA 会强烈激活干扰素通路,而 STV-C8 递送的 mRNA 几乎不引起干扰素反应——因为货物 RNA 是在细胞内"生物法"转录包装的,天然避开了体外转录产物的免疫刺激。
✦ 装载量:1–10 kb 的 mRNA 都能装,没有明显的包装上限——RNA 是"贴"在组装体表面的,不像病毒要塞进壳里。
冷冻电镜断层扫描(cryo-ET)给出了画像:STV-C8 出芽形成的囊泡直径 50–300 nm,多数约 110 nm,内部嵌着一颗颗直径 22±1.4 nm 的 C8 组装体。4°C 放一周活性不掉,生产就是普通的细胞转染收上清——这工艺成本跟 LNP 的微流控比,是另一个量级的简单。

▲ Fig. 2 STV-C8 表征与编程:a 最终结构(黑熊 PH 域 + SynL + tdPCP + C8 组装域);e cryo-ET 断层切片(膜灰色、C8 组装体青色);f–g 对 VLP/EPN24/SEND 与临床 LNP 的递送对比;i–j 用 AI 设计的 minibinder 给车装"门牌"实现细胞特异投递
04 给快递车装"门牌":想去哪就去哪
LNP 的一大痛点是没长眼睛,打到体内大部分被肝脏捡走。STV-C8 的"门牌"方案很优雅:先用点突变做出"瞎掉"的 VSV-G(K63Q/R370Q,保留逃出内体能力但不再结合广谱受体 LDLR),再在车表面装上计算设计的微型结合蛋白(minibinder),分别靶向 EGFR 或 IL-7Rα。流式结果显示,装了 EGFR 门牌的车对 EGFR⁺ 细胞的递送显著偏好,IL-7Rα 同理,两个门牌都装还有叠加效果——细胞特异性的编程被浓缩成了一个蛋白融合表达的事,不再依赖难搞的抗体。
05 能装的不只是荧光蛋白:基因编辑、抗病毒、重编程全上了
送货能力要在"难缠的货"上才算数。团队试了一串真实载荷:
✦ 基因编辑器:Cas9 mRNA + 双 sgRNA 装车,送进猪原代成纤维细胞,成功敲掉肌营养不良蛋白基因(dystrophin)的 51 号外显子;蛋白语言模型"凭空设计"的新型 CRISPR 蛋白 OpenCRISPR-1 也能送,编辑效率与野生型 Cas9 相当。
✦ 可编程抗病毒:Cas13d-NCS/crRNA 装车送进 SARS-CoV-2 感染的 iPS 来源人肺细胞,病毒复制被明显压制。
✦ 细胞重编程:把神经元转录因子 Ascl1 的 mRNA 送进原代小鼠星形胶质细胞,30%+ 的细胞成功转分化——"胶质细胞变神经元"这种神经再生梦,卡的一直是递送。
✦ 难搞的细胞类型:悬浮的人原代单核细胞、iPS 来源视网膜色素上皮球体(能渗到内层)、原代星形胶质细胞,全都能送进去。
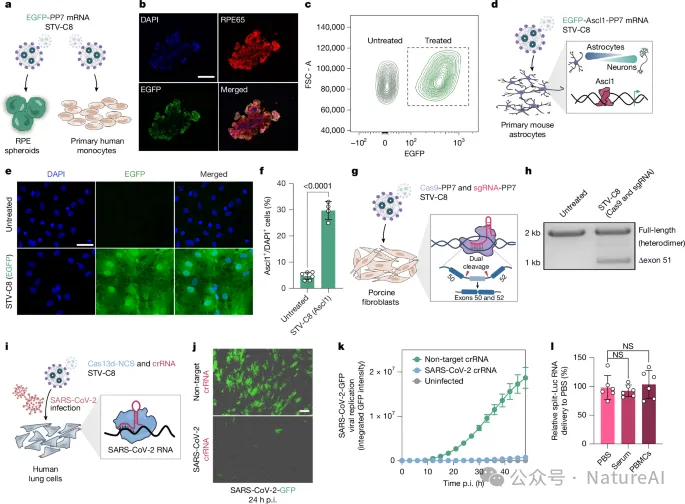
▲ Fig. 3 多种细胞模型上的递送:iPS 视网膜球体(b)、人单核细胞(c)、小鼠星形胶质细胞转分化(e–f)、猪成纤维细胞敲除 dystrophin 外显子 51(g–h)、SARS-CoV-2 感染的肺细胞 Cas13d 抗病毒(j–k)
06 进到动物体内:肺富集 + 猪肌肉敲基因
体外再漂亮,也得过体内这一关。小鼠尾静脉注射 STV-C8(EGFP) 后,用 vDISCO 全身组织透明化 + 光片显微镜扫全鼠,在近单细胞分辨率下看到了分布:信号高度集中在肺,肝脏(LNP 的默认收货地址)几乎没信号,而且肺内呈点状分布,提示有组织内选择性。血清转氨酶和免疫指标都没看到毒性信号——系统性给药的安全性初步过关。
重头戏是 DMD。杜氏肌营养不良的常见策略是"外显子跳跃",跳过突变外显子让蛋白读框恢复。团队把 Cas9/sgRNA 装进 STV-C8,直接注射到猪的肌肉里,72 小时后 PCR + Sanger 测序确认 51 号外显子被精准删除;在 DMD 患者来源的 Δ52 骨骼肌细胞里同样删除了外显子 51 并恢复了开放阅读框。作者也承认:肌肉局部注射离 DMD 的临床需求还很远,未来要解决全身递送、靶向肌肉、以及与 AAV 的正面比较。

▲ Fig. 4 体内实验:b–c 全鼠透明化成像显示 EGFP 表达集中在肺(几乎不进肝);d–f 猪肌肉注射 STV-C8(Cas9/sgRNA) 后 dystrophin 外显子 51 被删除(PCR + Sanger 验证)
07 我的看法:这是一次"走出进化局部最优"的示范
这篇论文最令人兴奋的不是某个具体数字,而是它示范了一种新范式:生物载体不再必须"从自然界里找/改",而是可以"按需求设计"。病毒衣壳是进化在"野外生存"约束下的局部最优解,当应用场景换成"实验室递送",AI 生成的非天然对称体反而更优——这个反直觉结论,靠的是把设计空间从"自然蛋白"扩展到"物理可行的全部蛋白"。
当然要泼几盆冷水。第一,LNP 的 benchmark 用的是体外转染和尾静脉注射,LNP 真正的护城河是经过大规模人体验证的工艺与监管路径,STV-C8 的免疫原性、重复给药、规模化生产都还缺数据;第二,"几万倍更高效"主要反映的是体外转染场景,体内靶向肌肉等组织的效率仍需从头验证;第三,这类"AI 设计蛋白 + 生物制造"的组合,监管上怎么归类(算生物制品还是载体?)也是新问题。但这些都不妨碍它成为 2026 年基因递送领域值得记住的一页——毕竟上一次有人类给 RNA 造出全新载具,还是进化自己干的活。
-
2026-09-05
-
2026-09-02
-
2026-09-02
-
2026-09-02
-
2026-09-02
-
2026-09-01
-
2026-09-01
-
2026-09-01
- ▪ AI应用篇:医药场景:AI制药
- ▪ RNA药物天亮了?AOC来了!
- ▪ 从疫苗到体内CAR-T,mRNA药物走到哪一步了?
- ▪ 认识环状RNA药物
- ▪ Vaxfectin,疫苗佐剂的”第二代阳离子先锋” 关于Vaxfectin的理化性质解析
- ▪ DSPE-PEG5000-Maleimide,长链PEG的”深度偶联平台” 关于DSPE-PEG5000-Maleimide的理化性质解析
- ▪ Cholesterol (Water Soluble),水相操作的”胆固醇替身” 关于Cholesterol (Water Soluble) 的理化性质解析
- ▪ DSPE-PEG2000-FITC,纳米颗粒示踪的”荧光灯塔” 关于DSPE-PEG2000-FITC的理化性质解析
- ▪ DOGS (PS),外膜翻转的”分子信号旗” 关于DOGS (PS) 的理化性质解析
- ▪ DLinDMA,siRNA基因沉默的”经典基石” 关于DLinDMA的理化性质解析
- ▪ DSPE-PEG2000-Mannose,巨噬细胞靶向的”导航仪” 关于DSPE-PEG2000-Man的理化性质解析
- ▪ DSPE-PEG2000-NHS,氨基偶联的”万能连接器” 关于DSPE-PEG2000-NHS的理化性质解析
- ▪ DMPE-PEG2000 ammonium,纳米结构脂质载体的”稳定基石” 关于DMPE-PEG2000 ammonium的理化性质解析
- ▪ DSPE-PEG2000-Biotin,生物素-亲和素放大系统的”分子钩子” 关于DSPE-PEG2000-Biotin的理化性质解析
- ▪ DSPE-PEG2000-Maleimide,“点击化学”偶联的分子桥梁 关于DSPE-PEG2000-Maleimide的理化性质解析


